Однією з основних тем цього розділу є взаємозв'язок і взаємна інформація окремих частин ока. Давайте розглянемо складне око краба-мечохвоста, над яким було проведено доволі багато дослідів. Насамперед треба зрозуміти, якого сорту інформація може передаватися нервами. Нервом передається щось на зразок збурення електричної природи, яке може бути легко зареєстроване. Це якесь хвилеподібне збурення, яке біжить по нерву і викликає на іншому його кінці якийсь ефект. Інформацію переносить довгий відросток нервової клітини, який називається аксоном, і якщо один кінець аксона збуджений, то по ньому біжить «імпульс». Далі, якщо по нерву вже проходить один імпульс, то за ним не може негайно піти другий. Усі імпульси мають одну й ту саму величину, так що, коли нерв сильно збуджений, це зовсім не означає, що по ньому біжить більший імпульс, а просто збільшується число імпульсів за 1 с. Величина ж імпульсу визначається нервовим волокном. Це важливо засвоїти, щоб зрозуміти, що станеться далі.
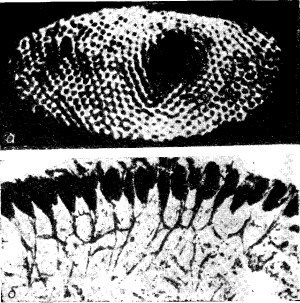 На фіг. 36.11,а показано складне око краба-мечохвоста; в ньому всього лише близько тисячі омматидіїв. Фіг. 36.11, б являє собою поперечний розріз цієї системи. Видно окремі омматидії і нервові волокна, що з'єднують їх з мозком. Але зверніть увагу, що навіть у цього краба є внутрішні зв'язки. Вони, звичайно, значно менш складні, ніж в оці людини, але саме це й дає нам можливість вивчити подібні зв'язки на простому прикладі.
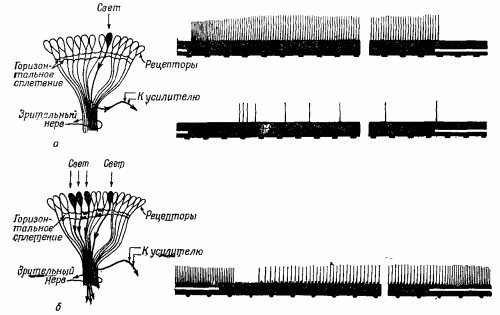 Давайте розглянемо такий дослід: накладемо на зоровий нерв нашого краба невеликі електроди і освітимо тільки один омматидій; це легко можна зробити за допомогою лінз. Якщо ми в якийсь момент часу t0 увімкнемо світло і вимірюватимемо виникаючі електричні імпульси, то побачимо, що після невеликої затримки піде швидка серія розрядів, частота яких поступово зменшуватиметься, поки не досягне якоїсь рівномірності (фіг. 36.12,а). Після вимкнення світла розряди припиняються. Цікаво, що якщо підсилювач залишається зв'язаним з тим самим нервом, а ми спрямуємо світло на інший омматидій, то нічого не станеться, сигналів не буде.
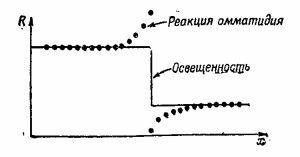 Проведемо тепер інший дослід: освітимо перший омматидій і отримаємо ті самі імпульси, але якщо тепер ми спрямуємо світло ще на інший сусідній омматидій, то на короткий час імпульси припиняються, після чого імпульси «побіжать» знову, але з набагато меншою частотою (фіг. 36.12,б). Виявляється, що імпульси, які виникають у другому омматидії, гальмують імпульси першого! Іншими словами, хоча кожен нерв і несе інформацію про свій омматидій, кількість цієї інформації пригнічується сигналами від іншого омматидія. Наприклад, коли більш-менш рівномірно освітлене все око, то сигнал, який прийшов від будь-якого окремого омматидія, буде відносно слабким, бо він пригнічений безліччю інших сигналів. Гальмування адитивне, тобто якщо ми освітимо кілька сусідніх омматидіїв, гальмування буде дуже сильним. Гальмування виявляється більшим, якщо омматидії розташовані ближче, але якщо вони достатньо віддалені один від одного, то гальмування практично зводиться до нуля. Таким чином, гальмування адитивне і залежить від відстані. Це перший приклад, коли інформація від різних частин ока переробляється в ньому самому. Якщо подумати трохи, то можна зрозуміти, що цей механізм призначений для посилення контрасту на краях об'єкта, бо якщо частина предмета освітлена, а частина ні, то омматидії, спрямовані на освітлену область, дають імпульси, які гальмуються всіма сусідніми омматидіями, що бачать освітлену область, так що вони відносно слабкі. З іншого боку, омматидії, що бачать межу світлової області і дають «білий» сигнал, хоча і пригнічені своїми сусідами, але тих не так уже й багато, бо деякі з них зовсім темні (не бачать світла), в результаті чого сигнал виявляється сильнішим. У підсумку виходить крива, подібна до зображеної на фіг. 36.13. Краб ніби бачить «посилений» контур.
Однак той факт, що існує таке «посилення» контуру, відомий уже давно. Це справді чудова річ, яка неодноразово обговорювалася психологами. Щоб зобразити предмет, нам достатньо намалювати лише його контур. Адже ми звикли бачити картини, на яких зображено самі лише контури! Але що ж таке контур? Адже це просто межа між темним і світлим або між одним кольором і іншим. Насправді, це зовсім не щось визначене. Можна думати що завгодно, але жодної лінії навколо предмета немає! Ні, все це тільки наша вигадка. Тепер ми починаємо розуміти, чому нам достатньо контуру, щоб уявити собі весь предмет. Очевидно, наші очі теж працюють подібно до очей мечохвоста, звичайно, набагато складніше, але все ж аналогічно.
Нарешті, я коротко опишу складніші досліди, дуже красиві й важкі, які були проведені над жабою. При їх виконанні в зоровий нерв жаби вводилися мініатюрні майстерно виготовлені ниткоподібні зонди, і вимірювалися сигнали, що йдуть уздовж одного певного аксона; точнісінько так само, як у випадку з крабом-мечохвостом, було виявлено, що інформація залежить не просто від однієї точки ока, а є сумою інформації, отриманої від кількох частин.
Найсучасніша картина операцій на оці жаби виглядає таким чином. Можна знайти чотири типи різних зорових нервових волокон, у тому сенсі, що існують чотири різних сорти відповідних реакцій. У цих експериментах не було спалахів світла: жаба не помічає таких речей. Вона просто сидить, і очі її нерухомі доти, доки листок лілії не почне рухатися. Тоді очі жаби рухаються якраз так, щоб зображення залишалося в полі зору. Однак сама по собі жаба очима не крутить і не шукає, куди подівся об'єкт. Якщо в її полі зору рухається щось, що нагадує невелику комаху (потрібно, щоб вона могла бачити щось маленьке, що рухається на нерухомому фоні), то виявляються чотири різних сорти нервових волокон, які відповідають на це подразнення. Їхні властивості наведені в табл. 36.1. Тривале (нестираєме) виявлення краю
На фіг. 36.11,а показано складне око краба-мечохвоста; в ньому всього лише близько тисячі омматидіїв. Фіг. 36.11, б являє собою поперечний розріз цієї системи. Видно окремі омматидії і нервові волокна, що з'єднують їх з мозком. Але зверніть увагу, що навіть у цього краба є внутрішні зв'язки. Вони, звичайно, значно менш складні, ніж в оці людини, але саме це й дає нам можливість вивчити подібні зв'язки на простому прикладі.
Давайте розглянемо такий дослід: накладемо на зоровий нерв нашого краба невеликі електроди і освітимо тільки один омматидій; це легко можна зробити за допомогою лінз. Якщо ми в якийсь момент часу t0 увімкнемо світло і вимірюватимемо виникаючі електричні імпульси, то побачимо, що після невеликої затримки піде швидка серія розрядів, частота яких поступово зменшуватиметься, поки не досягне якоїсь рівномірності (фіг. 36.12,а). Після вимкнення світла розряди припиняються. Цікаво, що якщо підсилювач залишається зв'язаним з тим самим нервом, а ми спрямуємо світло на інший омматидій, то нічого не станеться, сигналів не буде.
Проведемо тепер інший дослід: освітимо перший омматидій і отримаємо ті самі імпульси, але якщо тепер ми спрямуємо світло ще на інший сусідній омматидій, то на короткий час імпульси припиняються, після чого імпульси «побіжать» знову, але з набагато меншою частотою (фіг. 36.12,б). Виявляється, що імпульси, які виникають у другому омматидії, гальмують імпульси першого! Іншими словами, хоча кожен нерв і несе інформацію про свій омматидій, кількість цієї інформації пригнічується сигналами від іншого омматидія. Наприклад, коли більш-менш рівномірно освітлене все око, то сигнал, який прийшов від будь-якого окремого омматидія, буде відносно слабким, бо він пригнічений безліччю інших сигналів. Гальмування адитивне, тобто якщо ми освітимо кілька сусідніх омматидіїв, гальмування буде дуже сильним. Гальмування виявляється більшим, якщо омматидії розташовані ближче, але якщо вони достатньо віддалені один від одного, то гальмування практично зводиться до нуля. Таким чином, гальмування адитивне і залежить від відстані. Це перший приклад, коли інформація від різних частин ока переробляється в ньому самому. Якщо подумати трохи, то можна зрозуміти, що цей механізм призначений для посилення контрасту на краях об'єкта, бо якщо частина предмета освітлена, а частина ні, то омматидії, спрямовані на освітлену область, дають імпульси, які гальмуються всіма сусідніми омматидіями, що бачать освітлену область, так що вони відносно слабкі. З іншого боку, омматидії, що бачать межу світлової області і дають «білий» сигнал, хоча і пригнічені своїми сусідами, але тих не так уже й багато, бо деякі з них зовсім темні (не бачать світла), в результаті чого сигнал виявляється сильнішим. У підсумку виходить крива, подібна до зображеної на фіг. 36.13. Краб ніби бачить «посилений» контур.
Однак той факт, що існує таке «посилення» контуру, відомий уже давно. Це справді чудова річ, яка неодноразово обговорювалася психологами. Щоб зобразити предмет, нам достатньо намалювати лише його контур. Адже ми звикли бачити картини, на яких зображено самі лише контури! Але що ж таке контур? Адже це просто межа між темним і світлим або між одним кольором і іншим. Насправді, це зовсім не щось визначене. Можна думати що завгодно, але жодної лінії навколо предмета немає! Ні, все це тільки наша вигадка. Тепер ми починаємо розуміти, чому нам достатньо контуру, щоб уявити собі весь предмет. Очевидно, наші очі теж працюють подібно до очей мечохвоста, звичайно, набагато складніше, але все ж аналогічно.
Нарешті, я коротко опишу складніші досліди, дуже красиві й важкі, які були проведені над жабою. При їх виконанні в зоровий нерв жаби вводилися мініатюрні майстерно виготовлені ниткоподібні зонди, і вимірювалися сигнали, що йдуть уздовж одного певного аксона; точнісінько так само, як у випадку з крабом-мечохвостом, було виявлено, що інформація залежить не просто від однієї точки ока, а є сумою інформації, отриманої від кількох частин.
Найсучасніша картина операцій на оці жаби виглядає таким чином. Можна знайти чотири типи різних зорових нервових волокон, у тому сенсі, що існують чотири різних сорти відповідних реакцій. У цих експериментах не було спалахів світла: жаба не помічає таких речей. Вона просто сидить, і очі її нерухомі доти, доки листок лілії не почне рухатися. Тоді очі жаби рухаються якраз так, щоб зображення залишалося в полі зору. Однак сама по собі жаба очима не крутить і не шукає, куди подівся об'єкт. Якщо в її полі зору рухається щось, що нагадує невелику комаху (потрібно, щоб вона могла бачити щось маленьке, що рухається на нерухомому фоні), то виявляються чотири різних сорти нервових волокон, які відповідають на це подразнення. Їхні властивості наведені в табл. 36.1. Тривале (нестираєме) виявлення краю
Зображення
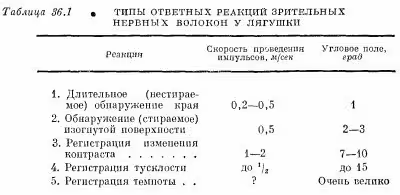
означає, що якщо ми внесемо предмет з різким краєм у поле зору жаби, то в тих фоторецепторах, повз які він рухається, виникає безліч імпульсів, які переходять потім у рідкісні імпульси, що тривають доти, поки край перебуває в полі зору, навіть якщо він стоїть на місці. Після вимкнення світла імпульси припиняються. Якщо знову увімкнути світло і край предмета, як і раніше, перебуває в полі зору, то імпульси виникають знову. Вони не зникають. Інший сорт волокон дуже схожий на перший, але з тим винятком, що вони не працюють, якщо край прямий. Потрібно, щоб край був вигнутим! Наскільки складною повинна бути система взаємних зв'язків сітківки ока жаби, щоб бачити рух вигнутої поверхні! Більше того, якщо ці волокна чимось збуджені, то збудження не може триматися так само довго, як у першому випадку, і якщо ми вимкнемо світло і ввімкнемо його знову, то імпульси не відновляться. Втім, це залежить від руху опуклої поверхні. Око бачить її рух і пам'ятає, де вона перебуває, але якщо ми на мить вимкнемо світло, то око просто забуває про неї і більше її не бачить.
Наступним типом є реєстрація зміни контрасту. Якщо край насувається або відсувається, то сигнали є. Але якщо предмет стоїть, то жодних сигналів узагалі немає.
Потім є «реєстратор тьмяності». Якщо інтенсивність світла зменшується, то виникають імпульси, якщо вона незмінна — імпульси припиняються: реєстратор працює, тільки коли світло тьмяніє.
І нарешті, є кілька волокон, які слугують реєстраторами темряви. Найдивовижніше, що вони безперестанку «стріляють»! Якщо світло посилюється, «постріли» стають рідшими, а якщо слабшає, то, навпаки, «вогонь» стає частішим, але він не припиняється ні на секунду. У темряві ж вони «строчать», як божевільні, нагадуючи постійно: «Темрява! Темрява! Темрява!»
Усі ці реакції здаються надто складними, щоб їх можна було якось класифікувати. Навіть підозріло, чи правильно витлумачені експерименти. Але найцікавіше, що ці ж класи дуже чітко виділяються самою анатомією жаби! Після того як волокна були класифіковані (дуже важливо, що це було зроблено пізніше), інші вимірювання виявили, що швидкості імпульсів, що біжать різними волокнами, не однакові. Так що було знайдено інший незалежний спосіб визначення сорту волокна!
Ще одне цікаве питання: наскільки велика аналізуюча область, пов'язана з якимось одним волокном? Відповідь виявилась різною для різних класів волокон.
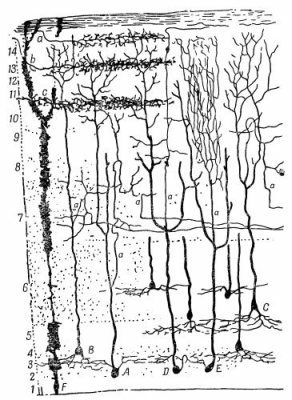 На фіг. 36.14 показано поверхню так званого покриву мозку жаби. Сюди приходять волокна із зорового нерва. Усі ці нервові волокна зв'язані з різними шарами покриву. Шарувата будова його нагадує будову сітківки (це один з фактів, що говорять нам про те, що сітківка і мозок дуже схожі один на одного). Якщо тепер взяти електрод і поступово переміщати його вниз по шарах, то можна визначити, де закінчуються різні типи зорових волокон. Дослід дає дуже красивий і дивовижний результат: виявляється, що різні сорти волокон закінчуються в різних шарах! У першому шарі закінчується перший тип волокон, у другому — другий; третій і п'ятий закінчуються в одному й тому самому шарі, а глибше за всіх проникає четвертий тип. (Вас не повинно дивувати, що їхні номери майже збіглися з номерами шарів! Саме тому вони й пронумеровані таким чином, у ранніх роботах вони нумерувалися інакше!)
Усе, що ми дізналися, можна коротко сформулювати так: очевидно, є три сорти пігментів. Може бути безліч різних сортів рецепторів, у які ці пігменти входять у різних пропорціях, однак безліч внутрішніх зв'язків дозволяє додавати і віднімати ефекти окремих нервових клітин. Таким чином, перш ніж ми справді зрозуміємо кольоровий зір, необхідно зрозуміти кінцевий етап — відчуття зору взагалі. Це все ще відкрите питання, але дослідження з мікроелектродами, можливо, дадуть нам зрештою додаткові відомості про те, як же ми бачимо кольори.
На фіг. 36.14 показано поверхню так званого покриву мозку жаби. Сюди приходять волокна із зорового нерва. Усі ці нервові волокна зв'язані з різними шарами покриву. Шарувата будова його нагадує будову сітківки (це один з фактів, що говорять нам про те, що сітківка і мозок дуже схожі один на одного). Якщо тепер взяти електрод і поступово переміщати його вниз по шарах, то можна визначити, де закінчуються різні типи зорових волокон. Дослід дає дуже красивий і дивовижний результат: виявляється, що різні сорти волокон закінчуються в різних шарах! У першому шарі закінчується перший тип волокон, у другому — другий; третій і п'ятий закінчуються в одному й тому самому шарі, а глибше за всіх проникає четвертий тип. (Вас не повинно дивувати, що їхні номери майже збіглися з номерами шарів! Саме тому вони й пронумеровані таким чином, у ранніх роботах вони нумерувалися інакше!)
Усе, що ми дізналися, можна коротко сформулювати так: очевидно, є три сорти пігментів. Може бути безліч різних сортів рецепторів, у які ці пігменти входять у різних пропорціях, однак безліч внутрішніх зв'язків дозволяє додавати і віднімати ефекти окремих нервових клітин. Таким чином, перш ніж ми справді зрозуміємо кольоровий зір, необхідно зрозуміти кінцевий етап — відчуття зору взагалі. Це все ще відкрите питання, але дослідження з мікроелектродами, можливо, дадуть нам зрештою додаткові відомості про те, як же ми бачимо кольори.