Біологічна мембрана - це структура, що складається з органічних молекул, має товщину близько 7-10нм і видима лише за допомогою електронного мікроскопа. У кожній клітині є плазматична мембрана, яка відокремлює вміст клітини від зовнішнього середовища, та внутрішні мембрани, які утворюють різні органели клітини (мітохондрії, органели, лізосоми тощо)
Плазматична мембрана виконує кілька важливих функцій.
1) Утворює вибірковий бар'єр, який відокремлює вміст клітини від навколишнього середовища, що дає змогу підтримувати сталими хімічний склад цитоплазми та її фізичні властивості.
2) Регулює транспорт речовин між вмістом клітини та розчином, що оточує клітину.
3) Бере участь в інформаційних процесах у живій клітині.
Плазматична мембрана виконує кілька важливих функцій.
1) Утворює вибірковий бар'єр, який відокремлює вміст клітини від навколишнього середовища, що дає змогу підтримувати сталими хімічний склад цитоплазми та її фізичні властивості.
2) Регулює транспорт речовин між вмістом клітини та розчином, що оточує клітину.
3) Бере участь в інформаційних процесах у живій клітині.
Хімічний склад і структура плазматичної мембрани
До складу плазматичної мембрани входять ліпіди, білки та вуглеводи. Співвідношення між ліпідами й білками може значно варіювати в різних клітинах.
Ліпіди мембрани бувають трьох видів: гліцерофосфоліпіди, сфінгофосфоліпіди та стероїди (холестерол).
Молекула гліцерофосфоліпіду складається із залишку триатомного спирту гліцеролу, атоми водню двох гідроксильних груп якого заміщені на два довгі ланцюги жирних кислот. Третій атом водню гідроксильної групи гліцерину заміщений залишком фосфорної кислоти, до якого, у свою чергу, приєднаний залишок однієї з азотистих основ (холін, етаноламін, серин, інозитол).
У молекулі гліцерофосфоліпіду можна виділити дві частини, які називаються головка (залишок гліцерину, залишок фосфорної кислоти й азотиста основа) та хвостики (залишки жирних кислот). Головка і хвостики сильно відрізняються за своїми фізичними властивостями. Головка молекули фосфоліпіду гідрофільна (″любить воду″). Вона добре розчинна у воді. Хвостики - гідрофобні (″бояться води″). Вони легко розчиняються в ліпідах та органічних розчинниках, але водою відштовхуються. Отже, молекула фосфоліпіду загалом, яка містить як водорозчинні, так і ліпідорозчинні ділянки, має амфіфільні властивості.
Молекули сфінгофосфоліпідів також складаються з головки та хвостиків. Від фосфоліпідів вони відрізняються тим, що замість залишку гліцерину містять залишок спирту сфінгозину.
Якщо сухі фосфоліпіди занурюють у воду, вони спонтанно утворюють залежно від своєї концентрації різні структури (Рис. 1). Одна з них - сферична структура, яку називають міцелою. Молекули фосфоліпідів упорядковані так, що гідрофільні головки спрямовані у водне середовище, а гідрофобні хвости - усередину структури.
За вищої концентрації фосфоліпідів їхні молекули утворюють бішарові пластинчасті структури. Німецькі вчені Gorter і Grendel довели, що така бішарова фосфоліпідна структура є основою мембрани клітини.
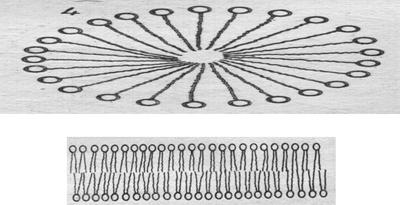 Рис. 1. Міцела та бішарова пластина у водному розчині
Фізичний стан фосфоліпідного бішару залежить від температури. Якщо температура перевищує критичну точку, бішар є рідиною. При цьому кожна молекула має змогу переміщатися.
Існує кілька видів руху молекул ліпідів: коливання, обертання, латеральна дифузія (переміщення молекул у межах свого шару), флип-флоп (переміщення молекул з одного шару ліпідів в інший, відбувається рідко).
Якщо температура падає нижче критичної точки, мембранні фосфоліпіди стають твердими. Мембрана втрачає плинність, і рух молекул у ній обмежується.
Згідно із сучасною рідинно-мозаїчною моделлю мембрани (модель Сінгера і Ніколсона), ліпідний бішар є основою мембрани. Молекули фосфоліпідів розташовані в ньому так, що їхні довгі осі паралельні й орієнтовані перпендикулярно до поверхні мембрани. Мембрана зберігається в рідкому стані завдяки температурі клітини та хімічному складу жирних кислот.
Білки мембрани поділяють на два види. Молекули першого типу є гідрофільними. Ці білки, які називаються периферичними, з'єднані з поверхнею мембрани порівняно слабкими електростатичними силами. Білки другого виду мають як гідрофільні, так і гідрофобні групи. Їхні молекули більшою чи меншою мірою занурені в мембрану й утримуються в ній міцнішими гідрофобними силами. Деякі білки пронизують мембрану від її внутрішньої до зовнішньої поверхні - інтегральні білки (Рис. 2).
Численні білки мембрани виконують різні функції (метаболічну, транспортну, рецепторну тощо). Функції білків мембрани істотно залежать від будови їхніх молекул.
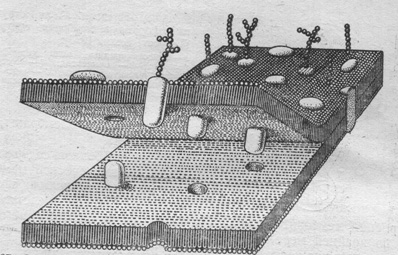 Рис. 2. Рідинно-мозаїчна модель мембрани: фосфоліпідний бішар; периферичні та інтегральні білки.
Ліпіди мембрани бувають трьох видів: гліцерофосфоліпіди, сфінгофосфоліпіди та стероїди (холестерол).
Молекула гліцерофосфоліпіду складається із залишку триатомного спирту гліцеролу, атоми водню двох гідроксильних груп якого заміщені на два довгі ланцюги жирних кислот. Третій атом водню гідроксильної групи гліцерину заміщений залишком фосфорної кислоти, до якого, у свою чергу, приєднаний залишок однієї з азотистих основ (холін, етаноламін, серин, інозитол).
У молекулі гліцерофосфоліпіду можна виділити дві частини, які називаються головка (залишок гліцерину, залишок фосфорної кислоти й азотиста основа) та хвостики (залишки жирних кислот). Головка і хвостики сильно відрізняються за своїми фізичними властивостями. Головка молекули фосфоліпіду гідрофільна (″любить воду″). Вона добре розчинна у воді. Хвостики - гідрофобні (″бояться води″). Вони легко розчиняються в ліпідах та органічних розчинниках, але водою відштовхуються. Отже, молекула фосфоліпіду загалом, яка містить як водорозчинні, так і ліпідорозчинні ділянки, має амфіфільні властивості.
Молекули сфінгофосфоліпідів також складаються з головки та хвостиків. Від фосфоліпідів вони відрізняються тим, що замість залишку гліцерину містять залишок спирту сфінгозину.
Якщо сухі фосфоліпіди занурюють у воду, вони спонтанно утворюють залежно від своєї концентрації різні структури (Рис. 1). Одна з них - сферична структура, яку називають міцелою. Молекули фосфоліпідів упорядковані так, що гідрофільні головки спрямовані у водне середовище, а гідрофобні хвости - усередину структури.
За вищої концентрації фосфоліпідів їхні молекули утворюють бішарові пластинчасті структури. Німецькі вчені Gorter і Grendel довели, що така бішарова фосфоліпідна структура є основою мембрани клітини.
Рис. 1. Міцела та бішарова пластина у водному розчині
Фізичний стан фосфоліпідного бішару залежить від температури. Якщо температура перевищує критичну точку, бішар є рідиною. При цьому кожна молекула має змогу переміщатися.Існує кілька видів руху молекул ліпідів: коливання, обертання, латеральна дифузія (переміщення молекул у межах свого шару), флип-флоп (переміщення молекул з одного шару ліпідів в інший, відбувається рідко).
Якщо температура падає нижче критичної точки, мембранні фосфоліпіди стають твердими. Мембрана втрачає плинність, і рух молекул у ній обмежується.
Згідно із сучасною рідинно-мозаїчною моделлю мембрани (модель Сінгера і Ніколсона), ліпідний бішар є основою мембрани. Молекули фосфоліпідів розташовані в ньому так, що їхні довгі осі паралельні й орієнтовані перпендикулярно до поверхні мембрани. Мембрана зберігається в рідкому стані завдяки температурі клітини та хімічному складу жирних кислот.
Білки мембрани поділяють на два види. Молекули першого типу є гідрофільними. Ці білки, які називаються периферичними, з'єднані з поверхнею мембрани порівняно слабкими електростатичними силами. Білки другого виду мають як гідрофільні, так і гідрофобні групи. Їхні молекули більшою чи меншою мірою занурені в мембрану й утримуються в ній міцнішими гідрофобними силами. Деякі білки пронизують мембрану від її внутрішньої до зовнішньої поверхні - інтегральні білки (Рис. 2).
Численні білки мембрани виконують різні функції (метаболічну, транспортну, рецепторну тощо). Функції білків мембрани істотно залежать від будови їхніх молекул.
Рис. 2. Рідинно-мозаїчна модель мембрани: фосфоліпідний бішар; периферичні та інтегральні білки.Класифікація процесів транспорту в біологічних мембранах
Мембрана клітини є вибірковим бар'єром для різних речовин, що містяться всередині й ззовні клітини. Існує кілька специфічних механізмів транспорту в мембранах. Усі вони можуть бути поділені на два типи: пасивний та активний транспорт.
Усі види пасивного транспорту ґрунтуються на принципі дифузії. Невелика частинка, розчинена в рідині, постійно зазнає ударів з боку молекул рідини, що її оточують. Результатом цього є хаотичний рух частинки, який називається броунівським рухом. Дифузія є результатом хаотичних незалежних рухів багатьох частинок. Якщо концентрація речовини однакова в кожній частині розчину, то рух частинок хаотичний. При цьому існує дрейф частинок з областей, де вони розташовані густіше, в області, де частинок менше.
Дифузія незаряджених частинок спричиняється їхнім концентраційним градієнтом і спрямована в бік зменшення цього градієнта. Частинки речовини переміщуються з області вищої концентрації речовини в області, де концентрація цієї речовини низька. Дифузія поступово зменшує градієнт концентрації доти, доки не настане стан рівноваги. При цьому в кожній точці встановиться однакова концентрація, і дифузія в обох напрямках здійснюватиметься в однаковій мірі. Дифузія є пасивним транспортом, оскільки не потребує витрат зовнішньої енергії.
Існує кілька видів дифузії в плазматичній мембрані:
1) Вільна дифузія.
2) Полегшена дифузія неелектролітів.
3) Електродифузія (полегшена дифузія іонів).
Розчин речовини високої концентрації має вищу вільну енергію, ніж розчин речовини нижчої концентрації. У процесі дифузії енергія розсіюється. Натомість речовина не може переміститися з області своєї низької концентрації в область її високої концентрації за рахунок внутрішньої енергії. Для цього потрібна додаткова енергія із зовнішнього джерела.
Щоб переміщувати речовини проти їхніх концентраційного чи електрохімічного градієнтів, мембрана використовує енергію метаболізму. Такий тип транспорту називається активним транспортом. Є два основні види активного транспорту:
1) Первинно-активний транспорт.
2) Вторинно-активний транспорт.
Складніші механізми транспорту - екзоцитоз та ендоцитоз, під час яких макромолекули надходять у клітину або виділяються з неї через невеликі, оточені мембраною везикули.
Усі види пасивного транспорту ґрунтуються на принципі дифузії. Невелика частинка, розчинена в рідині, постійно зазнає ударів з боку молекул рідини, що її оточують. Результатом цього є хаотичний рух частинки, який називається броунівським рухом. Дифузія є результатом хаотичних незалежних рухів багатьох частинок. Якщо концентрація речовини однакова в кожній частині розчину, то рух частинок хаотичний. При цьому існує дрейф частинок з областей, де вони розташовані густіше, в області, де частинок менше.
Дифузія незаряджених частинок спричиняється їхнім концентраційним градієнтом і спрямована в бік зменшення цього градієнта. Частинки речовини переміщуються з області вищої концентрації речовини в області, де концентрація цієї речовини низька. Дифузія поступово зменшує градієнт концентрації доти, доки не настане стан рівноваги. При цьому в кожній точці встановиться однакова концентрація, і дифузія в обох напрямках здійснюватиметься в однаковій мірі. Дифузія є пасивним транспортом, оскільки не потребує витрат зовнішньої енергії.
Існує кілька видів дифузії в плазматичній мембрані:
1) Вільна дифузія.
2) Полегшена дифузія неелектролітів.
3) Електродифузія (полегшена дифузія іонів).
Розчин речовини високої концентрації має вищу вільну енергію, ніж розчин речовини нижчої концентрації. У процесі дифузії енергія розсіюється. Натомість речовина не може переміститися з області своєї низької концентрації в область її високої концентрації за рахунок внутрішньої енергії. Для цього потрібна додаткова енергія із зовнішнього джерела.
Щоб переміщувати речовини проти їхніх концентраційного чи електрохімічного градієнтів, мембрана використовує енергію метаболізму. Такий тип транспорту називається активним транспортом. Є два основні види активного транспорту:
1) Первинно-активний транспорт.
2) Вторинно-активний транспорт.
Складніші механізми транспорту - екзоцитоз та ендоцитоз, під час яких макромолекули надходять у клітину або виділяються з неї через невеликі, оточені мембраною везикули.
Вільна дифузія
Речовини, що переміщуються через мембрану шляхом вільної дифузії, не утворюють жодних хімічних зв'язків з іншими речовинами.
Для кількісної характеристики дифузії використовують фізичну величину - потік речовини (J) : J = dn/dt · 1/S (1),
де n - кількість речовини в молях, що переміщується внаслідок дифузії через поверхню S, перпендикулярну до потоку речовини, за одиницю часу.
Перший закон Фіка стверджує, що потік речовини, яка переміщується шляхом дифузії, пропорційний рушійній силі дифузії - градієнту концентрації речовини: J = - D · dC/dx (2).
Від'ємний знак означає, що потік спрямований з області високої концентрації речовини в область з нижчою її концентрацією, внаслідок чого градієнт концентрації зменшується. D - коефіцієнт дифузії, який залежить від природи речовини та температури:
D = U·R·T (3),
де U - рухливість частинок речовини, R - універсальна газова стала, T - абсолютна температура.
Якщо дифузія здійснюється через мембрану, рівняння (2) можна подати як J = -P · (C1 - C2) (4),
де C1 і C2 - концентрація розчину всередині та поза клітиною, P - коефіцієнт проникності мембрани для даної речовини. Коефіцієнт проникності визначається коефіцієнтом дифузії D речовини, товщиною мембрани d та коефіцієнтом розподілу речовини K, який залежить від розчинності речовини в органічних розчинниках, але не у воді.
P = Dk/d (5)
Проникність мембрани для неелектролітів істотно залежить від їхньої здатності розчинятися в біліпідному шарі мембрани. Проникність мембрани для різних речовин визначають за розчинністю в оливковій олії, яку можна розглядати як модель мембранних ліпідів. Отже, мембрана добре проникна для ліпідорозчинних речовин (спирти, ефіри), що не мають біологічного значення. Але такі гідрофільні речовини, як цукри, амінокислоти, не здатні проникати через біологічну мембрану шляхом вільної дифузії. Для цього потрібні спеціальні системи транспорту (див. нижче).
Проникність мембрани залежить також від розміру молекул. Дрібні молекули можуть проникати через мембрану шляхом вільної дифузії. Наприклад, вода не розчиняється в ліпідах та органічних розчинниках. Але вона проникає через плазматичну мембрану завдяки невеликому розміру молекул. Проникність мембрани для води дуже висока. Припускають, що вона проникає в мембрану через тимчасові структурні дефекти, які утворюються під час теплових коливань хвостиків із жирних кислот. Ці дефекти (кінки) дають змогу переміщуватися через мембрану не лише молекулам води, а й іншим невеликим гідрофільним молекулам (кисень, вуглекислий газ).
Для кількісної характеристики дифузії використовують фізичну величину - потік речовини (J) : J = dn/dt · 1/S (1),
де n - кількість речовини в молях, що переміщується внаслідок дифузії через поверхню S, перпендикулярну до потоку речовини, за одиницю часу.
Перший закон Фіка стверджує, що потік речовини, яка переміщується шляхом дифузії, пропорційний рушійній силі дифузії - градієнту концентрації речовини: J = - D · dC/dx (2).
Від'ємний знак означає, що потік спрямований з області високої концентрації речовини в область з нижчою її концентрацією, внаслідок чого градієнт концентрації зменшується. D - коефіцієнт дифузії, який залежить від природи речовини та температури:
D = U·R·T (3),
де U - рухливість частинок речовини, R - універсальна газова стала, T - абсолютна температура.
Якщо дифузія здійснюється через мембрану, рівняння (2) можна подати як J = -P · (C1 - C2) (4),
де C1 і C2 - концентрація розчину всередині та поза клітиною, P - коефіцієнт проникності мембрани для даної речовини. Коефіцієнт проникності визначається коефіцієнтом дифузії D речовини, товщиною мембрани d та коефіцієнтом розподілу речовини K, який залежить від розчинності речовини в органічних розчинниках, але не у воді.
P = Dk/d (5)
Проникність мембрани для неелектролітів істотно залежить від їхньої здатності розчинятися в біліпідному шарі мембрани. Проникність мембрани для різних речовин визначають за розчинністю в оливковій олії, яку можна розглядати як модель мембранних ліпідів. Отже, мембрана добре проникна для ліпідорозчинних речовин (спирти, ефіри), що не мають біологічного значення. Але такі гідрофільні речовини, як цукри, амінокислоти, не здатні проникати через біологічну мембрану шляхом вільної дифузії. Для цього потрібні спеціальні системи транспорту (див. нижче).
Проникність мембрани залежить також від розміру молекул. Дрібні молекули можуть проникати через мембрану шляхом вільної дифузії. Наприклад, вода не розчиняється в ліпідах та органічних розчинниках. Але вона проникає через плазматичну мембрану завдяки невеликому розміру молекул. Проникність мембрани для води дуже висока. Припускають, що вона проникає в мембрану через тимчасові структурні дефекти, які утворюються під час теплових коливань хвостиків із жирних кислот. Ці дефекти (кінки) дають змогу переміщуватися через мембрану не лише молекулам води, а й іншим невеликим гідрофільним молекулам (кисень, вуглекислий газ).
Полегшена дифузія
Великі гідрофільні молекули (цукри, амінокислоти) переміщуються через мембрани за допомогою спеціальних молекул - мембранних переносників. Мембранні переносники являють собою інтегральні білки, які мають центри зв'язування транспортованих молекул. Утворений зв'язок білка й переносника є оборотним і має високий ступінь специфічності. Транспортована молекула проходить через мембрану внаслідок зміни конформації білка-переносника під час хімічної взаємодії центрів зв'язування обох молекул.
Транспорт речовин через мембрану, у якому використовуються транспортні молекули, називається полегшеною дифузією. Цей тип транспорту мембрани є одним із видів дифузії, оскільки транспортована речовина переміщується за градієнтом концентрації. Жодна додаткова енергія для цього процесу не потрібна. Але полегшена дифузія відрізняється від вільної дифузії своєю високою специфічністю. Переносники мембрани можуть розпізнавати навіть оптичні ізомери однієї й тієї самої речовини.
Іншою особливістю полегшеної дифузії є феномен насичення. Потік речовини, що транспортується шляхом полегшеної дифузії, зростає залежно від концентрації речовини лише до певної величини. Потім зростання потоку припиняється, оскільки транспортна система повністю зайнята. Отже, дія транспортної системи подібна до каталізу ферментами, проте переносник не прискорює хімічну реакцію, а переміщує речовину через мембрану.
Існують деякі системи переносників, здатні транспортувати більше ніж одну речовину. Процес називається симпортом (або котранспортом), якщо речовини переміщуються в одному й тому самому напрямку, і антипортом (зустрічним транспортом), якщо напрямки переміщення речовин протилежні.
Прикладом полегшеної дифузії є дія системи транспорту глюкози через мембрани еритроцитів і м'язових клітин. Інший приклад - антипорт бікарбонату та іонів гідроксилу в плазматичній мембрані еритроцитів.
Транспорт речовин через мембрану, у якому використовуються транспортні молекули, називається полегшеною дифузією. Цей тип транспорту мембрани є одним із видів дифузії, оскільки транспортована речовина переміщується за градієнтом концентрації. Жодна додаткова енергія для цього процесу не потрібна. Але полегшена дифузія відрізняється від вільної дифузії своєю високою специфічністю. Переносники мембрани можуть розпізнавати навіть оптичні ізомери однієї й тієї самої речовини.
Іншою особливістю полегшеної дифузії є феномен насичення. Потік речовини, що транспортується шляхом полегшеної дифузії, зростає залежно від концентрації речовини лише до певної величини. Потім зростання потоку припиняється, оскільки транспортна система повністю зайнята. Отже, дія транспортної системи подібна до каталізу ферментами, проте переносник не прискорює хімічну реакцію, а переміщує речовину через мембрану.
Існують деякі системи переносників, здатні транспортувати більше ніж одну речовину. Процес називається симпортом (або котранспортом), якщо речовини переміщуються в одному й тому самому напрямку, і антипортом (зустрічним транспортом), якщо напрямки переміщення речовин протилежні.
Прикладом полегшеної дифузії є дія системи транспорту глюкози через мембрани еритроцитів і м'язових клітин. Інший приклад - антипорт бікарбонату та іонів гідроксилу в плазматичній мембрані еритроцитів.
Електродифузія
Електродифузія - дифузія електрично заряджених частинок (іонів) під впливом концентраційних та електричних градієнтів. Іони - атоми або групи атомів, які набувають електричного заряду, втрачаючи чи приєднуючи електрони. Ліпідний бішар мембрани непроникний для іонів. Вони можуть проникнути через плазматичну мембрану лише за допомогою спеціальних структур - іонних каналів, які утворені інтегральними білками.
Рушійною силою дифузії є не лише різниця концентрації іонів усередині й поза клітиною, а й різниця електричних потенціалів, що створюються цими іонами по обидва боки мембрани. Отже, дифузійний потік іонів визначається градієнтом електрохімічного потенціалу (електрохімічний градієнт).
Електрохімічний потенціал є енергією іонів:
Рушійною силою дифузії є не лише різниця концентрації іонів усередині й поза клітиною, а й різниця електричних потенціалів, що створюються цими іонами по обидва боки мембрани. Отже, дифузійний потік іонів визначається градієнтом електрохімічного потенціалу (електрохімічний градієнт).
Електрохімічний потенціал є енергією іонів:
Зображення
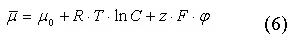
μ0- стандартний хімічний потенціал, який залежить від хімічної природи речовини та температури, R - універсальна газова стала, T - температура, C - концентрація іона, z - електричний заряд, F - стала Фарадея, φ - електричний потенціал.
Залежність потоку іонів J від електрохімічного градієнта визначається рівнянням Теорелла:
Залежність потоку іонів J від електрохімічного градієнта визначається рівнянням Теорелла:
Зображення
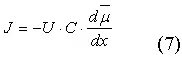
де U - рухливість іонів, C - концентрація іонів, dμ/dx - електрохімічний градієнт.
Підставляючи (6) у (7), можна отримати рівняння Нернста-Планка з урахуванням двох градієнтів, які зумовлюють дифузію іонів:
Підставляючи (6) у (7), можна отримати рівняння Нернста-Планка з урахуванням двох градієнтів, які зумовлюють дифузію іонів:
Зображення
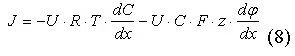
Іонні канали мембрани являють собою інтегральні білки мембрани, які утворюють у мембрані отвори, заповнені водою. У плазматичній мембрані виявлено ряд іонних каналів, які характеризуються високою специфічністю, що допускає переміщення лише одного виду іонів. Існують натрієві, калієві, кальцієві та хлорні канали. Кожен із них має так званий селективний фільтр, який здатний пропускати лише певні іони. Існує кілька теорій, що пояснюють вибірковість іонних каналів плазматичної мембрани.
Проникність іонних каналів може змінюватися завдяки наявності воріт, певних груп атомів у складі білків, які утворюють канал. Конформаційні зміни воріт переводять канал з відкритого стану в закритий і навпаки. Механізми регуляції положення воріт можуть відрізнятися в різних каналах. Деякі з них відкриваються при змінах електричного потенціалу мембрани. Інші відкриваються під дією специфічних хімічних речовин, які виконують сигнальні функції.
Проникність іонних каналів може змінюватися завдяки наявності воріт, певних груп атомів у складі білків, які утворюють канал. Конформаційні зміни воріт переводять канал з відкритого стану в закритий і навпаки. Механізми регуляції положення воріт можуть відрізнятися в різних каналах. Деякі з них відкриваються при змінах електричного потенціалу мембрани. Інші відкриваються під дією специфічних хімічних речовин, які виконують сигнальні функції.
Первинно-активний транспорт
Дія пасивного транспорту через мембрану, під час якого іони переміщуються за їхнім електрохімічним градієнтом, має бути збалансована їхнім активним транспортом проти відповідних градієнтів. Інакше іонні градієнти повністю зникли б, а концентрації іонів по обидва боки мембрани прийшли б у рівновагу. Це справді відбувається, коли активний транспорт через мембрану блокують охолодженням або застосуванням деяких отрут.
Існує кілька систем активного транспорту іонів у плазматичній мембрані (іонні насоси):
1) Натрій-калієвий насос.
2) Кальцієвий насос.
3) Водневий насос.
Активний транспорт - перенесення іонів проти їхніх електрохімічних градієнтів із використанням енергії метаболізму:
Натрій-калієвий насос існує в плазматичних мембранах усіх тваринних і рослинних клітин. Він викачує іони натрію з клітин і нагнітає в клітини іони калію. У результаті концентрація калію в клітинах істотно перевищує концентрацію іонів натрію.
Натрій-калієвий насос - один з інтегральних білків мембрани. Він має ензимні властивості й здатний гідролізувати аденозинтрифосфорну кислоту (АТФ), що є основним джерелом і сховищем енергії метаболізму в клітині. Завдяки цьому зазначений інтегральний білок називається натрій-калієвою АТФазою. Молекула АТФ розпадається на молекулу аденозиндифосфорної кислоти (АДФ) і неорганічний фосфат.
Отже, натрій-калієвий насос виконує трансмембранний антипорт іонів натрію та калію. Молекула насоса існує у двох основних конформаціях, взаємне перетворення яких стимулюється гідролізом АТФ. Ці конформації виконують функції переносників натрію й калію. Під час розщеплення натрій-калієвою АТФазою молекули АТФ неорганічний фосфат приєднується до білка. У цьому стані натрій-калієва АТФаза зв'язує три іони натрію, які викачуються з клітини. Потім молекула неорганічного фосфату відокремлюється від насоса-білка, і насос перетворюється на переносник калію. У результаті два іони калію потрапляють у клітину. Отже, під час розщеплення кожної молекули АТФ викачуються три іони натрію з клітини і два іони калію закачуються в клітину. Один натрій-калієвий насос може перенести через мембрану 150- 600 іонів натрію за секунду. Наслідком його роботи є підтримання трансмембранних градієнтів натрію та калію.
Через мембрани деяких клітин тварин (наприклад, м'язових) здійснюється первинно-активний транспорт іонів кальцію з клітини (кальцієвий насос), що призводить до наявності трансмембранного градієнта зазначених іонів.
Водневий іонний насос діє в мембрані бактеріальних клітин і в мітохондріях, а також у клітинах шлунка, що переміщують водневі іони з крові в його порожнину.
Існує кілька систем активного транспорту іонів у плазматичній мембрані (іонні насоси):
1) Натрій-калієвий насос.
2) Кальцієвий насос.
3) Водневий насос.
Активний транспорт - перенесення іонів проти їхніх електрохімічних градієнтів із використанням енергії метаболізму:
Натрій-калієвий насос існує в плазматичних мембранах усіх тваринних і рослинних клітин. Він викачує іони натрію з клітин і нагнітає в клітини іони калію. У результаті концентрація калію в клітинах істотно перевищує концентрацію іонів натрію.
Натрій-калієвий насос - один з інтегральних білків мембрани. Він має ензимні властивості й здатний гідролізувати аденозинтрифосфорну кислоту (АТФ), що є основним джерелом і сховищем енергії метаболізму в клітині. Завдяки цьому зазначений інтегральний білок називається натрій-калієвою АТФазою. Молекула АТФ розпадається на молекулу аденозиндифосфорної кислоти (АДФ) і неорганічний фосфат.
Отже, натрій-калієвий насос виконує трансмембранний антипорт іонів натрію та калію. Молекула насоса існує у двох основних конформаціях, взаємне перетворення яких стимулюється гідролізом АТФ. Ці конформації виконують функції переносників натрію й калію. Під час розщеплення натрій-калієвою АТФазою молекули АТФ неорганічний фосфат приєднується до білка. У цьому стані натрій-калієва АТФаза зв'язує три іони натрію, які викачуються з клітини. Потім молекула неорганічного фосфату відокремлюється від насоса-білка, і насос перетворюється на переносник калію. У результаті два іони калію потрапляють у клітину. Отже, під час розщеплення кожної молекули АТФ викачуються три іони натрію з клітини і два іони калію закачуються в клітину. Один натрій-калієвий насос може перенести через мембрану 150- 600 іонів натрію за секунду. Наслідком його роботи є підтримання трансмембранних градієнтів натрію та калію.
Через мембрани деяких клітин тварин (наприклад, м'язових) здійснюється первинно-активний транспорт іонів кальцію з клітини (кальцієвий насос), що призводить до наявності трансмембранного градієнта зазначених іонів.
Водневий іонний насос діє в мембрані бактеріальних клітин і в мітохондріях, а також у клітинах шлунка, що переміщують водневі іони з крові в його порожнину.
Вторинно-активний транспорт
Існують системи транспорту через мембрани, які переносять речовини з області їхньої низької концентрації в область високої концентрації без безпосередніх витрат енергії метаболізму клітини (як у випадку первинно-активного транспорту). Такий вид транспорту називається вторинно- активним транспортом.
Вторинно-активний транспорт певної речовини можливий лише тоді, коли він пов'язаний з транспортом іншої речовини за її концентраційним або електрохімічним градієнтом. Це симпортне або антипортне перенесення речовин.
При симпорті двох речовин іон і інша молекула (або іон) зв'язуються одночасно з одним переносником раніше, ніж відбудеться конформаційна зміна цього переносника. Оскільки провідна речовина переміщується за градієнтом концентрації або електрохімічним градієнтом, керована речовина змушена переміщуватися проти свого градієнта.
Іони натрію є звичайно провідними речовинами в системах симпорту клітин тварин. Високий електрохімічний градієнт цих іонів створюється натрій-калієвим насосом. Керованими речовинами є цукри, амінокислоти та деякі інші іони. Наприклад, під час всмоктування поживних речовин у шлунково-кишковому тракті глюкоза й амінокислоти надходять із клітин тонкої кишки в кров шляхом симпорту з іонами натрію. Після фільтрації первинної сечі в ниркових гломерулах ці речовини повертаються в кров тією самою системою вторинно-активного транспорту.
Вторинно-активний транспорт певної речовини можливий лише тоді, коли він пов'язаний з транспортом іншої речовини за її концентраційним або електрохімічним градієнтом. Це симпортне або антипортне перенесення речовин.
При симпорті двох речовин іон і інша молекула (або іон) зв'язуються одночасно з одним переносником раніше, ніж відбудеться конформаційна зміна цього переносника. Оскільки провідна речовина переміщується за градієнтом концентрації або електрохімічним градієнтом, керована речовина змушена переміщуватися проти свого градієнта.
Іони натрію є звичайно провідними речовинами в системах симпорту клітин тварин. Високий електрохімічний градієнт цих іонів створюється натрій-калієвим насосом. Керованими речовинами є цукри, амінокислоти та деякі інші іони. Наприклад, під час всмоктування поживних речовин у шлунково-кишковому тракті глюкоза й амінокислоти надходять із клітин тонкої кишки в кров шляхом симпорту з іонами натрію. Після фільтрації первинної сечі в ниркових гломерулах ці речовини повертаються в кров тією самою системою вторинно-активного транспорту.
Ендоцитоз і екзоцитоз
Макромолекули - білки та нуклеїнові кислоти - не можуть проникнути через плазматичну мембрану за допомогою механізмів транспорту, розглянутих вище, через свої великі розміри. Під час трансмембранного транспорту великих молекул сама плазматична мембрана зазнає узгоджених переміщень, унаслідок яких частина рідкого позаклітинного середовища поглинається (ендоцитоз) або частина внутрішнього середовища клітини виділяється (екзоцитоз).
У процесі ендоцитозу плазматична мембрана оточує частину зовнішнього середовища, утворюючи навколо неї оболонку, внаслідок чого виникає везикула, яка надходить усередину клітини. При піноцитозі утворюються невеликі, заповнені рідиною везикули. У процесі фагоцитозу формуються великі везикули, які містять твердий матеріал, наприклад, клітини бактерій.
При екзоцитозі транспортована речовина синтезується в клітині, зв'язується мембраною у везикули й експортується з клітини. Таким чином транспортуються з клітини специфічні білки, нуклеїнові кислоти, нейромедіатори тощо.
У процесі ендоцитозу плазматична мембрана оточує частину зовнішнього середовища, утворюючи навколо неї оболонку, внаслідок чого виникає везикула, яка надходить усередину клітини. При піноцитозі утворюються невеликі, заповнені рідиною везикули. У процесі фагоцитозу формуються великі везикули, які містять твердий матеріал, наприклад, клітини бактерій.
При екзоцитозі транспортована речовина синтезується в клітині, зв'язується мембраною у везикули й експортується з клітини. Таким чином транспортуються з клітини специфічні білки, нуклеїнові кислоти, нейромедіатори тощо.