Електричний заряд
Електричний заряд, подібно до маси, є фундаментальною властивістю речовин. Існує два типи зарядів, умовно позначені як додатний і від'ємний.
Кожна речовина має електричний заряд, величина якого може бути додатною, від'ємною або дорівнювати нулю. Наприклад, електрони заряджені від'ємно, а протони - додатно. Оскільки кожен атом містить один або більше електронів і рівну кількість протонів, загальне число зарядів у макроскопічному об'єкті - надзвичайно велике, але в цілому такий об'єкт не заряджений або має невеликий заряд.
Заряд електрона за абсолютною величиною є найменшим.
Кожна речовина має електричний заряд, величина якого може бути додатною, від'ємною або дорівнювати нулю. Наприклад, електрони заряджені від'ємно, а протони - додатно. Оскільки кожен атом містить один або більше електронів і рівну кількість протонів, загальне число зарядів у макроскопічному об'єкті - надзвичайно велике, але в цілому такий об'єкт не заряджений або має невеликий заряд.
Заряд електрона за абсолютною величиною є найменшим.
Електричне поле. Закон Кулона
Кожен заряджений об'єкт утворює в навколишньому просторі електричне поле. Електричне поле є видом матерії, за допомогою якого заряджені об'єкти взаємодіють один з одним. Пробний заряд, внесений в електричне поле іншого заряду, "відчуває" присутність цього поля. Він буде притягуватися до заряду, що створює електричне поле, або відштовхуватися від нього.
Закон Кулона визначає електричну силу F, що діє між двома точковими зарядами q1 і q2:
Закон Кулона визначає електричну силу F, що діє між двома точковими зарядами q1 і q2:
Зображення
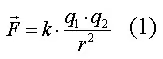
k - стала, яка визначається обраними умовами; r - відстань між зарядами.
Згідно із законом Кулона, сила діє в напрямку лінії, що з'єднує два заряди. Величина сили, яка діє на заряди, пропорційна величині кожного із зарядів і обернено пропорційна квадрату відстані між ними.
Електричне поле можна подати у вигляді силових ліній, що показують напрямок електричних сил. Ці сили спрямовані від заряду, коли він додатний, і до заряду, якщо він від'ємний. Якщо додатний заряд помістити в електричне поле, на нього діє сила в напрямку поля. На від'ємний заряд діє сила, спрямована протилежно до напрямку поля.
Згідно із законом Кулона, сила діє в напрямку лінії, що з'єднує два заряди. Величина сили, яка діє на заряди, пропорційна величині кожного із зарядів і обернено пропорційна квадрату відстані між ними.
Електричне поле можна подати у вигляді силових ліній, що показують напрямок електричних сил. Ці сили спрямовані від заряду, коли він додатний, і до заряду, якщо він від'ємний. Якщо додатний заряд помістити в електричне поле, на нього діє сила в напрямку поля. На від'ємний заряд діє сила, спрямована протилежно до напрямку поля.
Характеристики електричного поля
1) Напруженість електричного поля. Кожен електричний заряд створює навколо себе електричне поле. Якщо інший заряд q внести в це поле, то на нього діятиме сила F, пропорційна q і напруженості електричного поля E:
Зображення
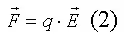
Напруженість електричного поля E (або просто напруженість) у будь-якій точці визначається як електрична сила F, що діє на додатний заряд q, поміщений у цю точку:
Зображення
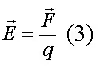
E - векторна величина, тобто має як величину, так і напрямок. Одиницею вимірювання напруженості є вольт на метр [В/м].
Принцип накладання (суперпозиції) вказує, що якщо електричне поле створює множина зарядів, сумарна напруженість визначається додаванням напруженостей, створених кожним зарядом, за правилами додавання векторів.
2) Електричний потенціал. Щоб перемістити заряд проти електричної сили, яка діє на нього, необхідно виконати роботу. Ця робота не залежить від шляху переміщення заряду в електричному полі, але залежить від початкового і кінцевого положення заряду.
Якщо заряд переміщується з однієї точки в іншу проти електричної сили, його потенціальна електростатична енергія збільшується. Електричний потенціал у будь-якій точці дорівнює електростатичній потенціальній енергії Wp, яку має додатний заряд q у цій точці: φ = Wp/q (4).
Можна також сказати, що електричний потенціал у точці дорівнює роботі, яку необхідно виконати проти електричних сил, щоб перемістити додатний заряд з даної точки на велику відстань, де потенціал електричного поля дорівнює нулю. Електричний потенціал є скалярною величиною і вимірюється у вольтах (В).
Напруженість електричного поля є від'ємним градієнтом електричного потенціалу - показника зміни потенціалу з відстанню x: E→ = - dφ/dx. За допомогою приладів можна виміряти різницю потенціалів, але не напруженість поля. Останню можна обчислити, якщо використати залежність між E→ і Δφ : де Δφ = E·l - відстань між двома точками електричного поля.
Принцип накладання (суперпозиції) вказує, що якщо електричне поле створює множина зарядів, сумарна напруженість визначається додаванням напруженостей, створених кожним зарядом, за правилами додавання векторів.
2) Електричний потенціал. Щоб перемістити заряд проти електричної сили, яка діє на нього, необхідно виконати роботу. Ця робота не залежить від шляху переміщення заряду в електричному полі, але залежить від початкового і кінцевого положення заряду.
Якщо заряд переміщується з однієї точки в іншу проти електричної сили, його потенціальна електростатична енергія збільшується. Електричний потенціал у будь-якій точці дорівнює електростатичній потенціальній енергії Wp, яку має додатний заряд q у цій точці: φ = Wp/q (4).
Можна також сказати, що електричний потенціал у точці дорівнює роботі, яку необхідно виконати проти електричних сил, щоб перемістити додатний заряд з даної точки на велику відстань, де потенціал електричного поля дорівнює нулю. Електричний потенціал є скалярною величиною і вимірюється у вольтах (В).
Напруженість електричного поля є від'ємним градієнтом електричного потенціалу - показника зміни потенціалу з відстанню x: E→ = - dφ/dx. За допомогою приладів можна виміряти різницю потенціалів, але не напруженість поля. Останню можна обчислити, якщо використати залежність між E→ і Δφ : де Δφ = E·l - відстань між двома точками електричного поля.
Мембранний потенціал спокою
Кожна клітина перетворює частину своєї метаболічної енергії на електростатичну енергію. Джерелом електричного поля клітини є плазматична мембрана. Існує різниця потенціалів між внутрішньою і зовнішньою поверхнями плазматичної мембрани. Ця різниця потенціалів називається мембранним потенціалом.
Різницю потенціалів між внутрішнім і зовнішнім середовищами клітини можна виміряти безпосередньо й досить точно. Для цього використовують мікроелектрод, що являє собою скляну мікропіпетку з діаметром кінчика до 1мкм, заповнену концентрованим розчином KCl. Мікроелектрод підключають до підсилювача напруги реєструвального пристрою. Можна вимірювати мембранний потенціал м'язових, нервових клітин або клітин інших тканин. Інший електрод (референтний) встановлений на поверхні тканини.
Коли кінчик мікроелектрода перебуває поза клітиною, його потенціал відносно референтного електрода дорівнює нулю. Якщо кінець електрода занурюють у клітину, проколюючи плазматичну мембрану, різниця потенціалів різко стає від'ємною. На шкалі вимірювального пристрою реєструється різниця потенціалів між внутрішнім і зовнішнім середовищами клітини. Ця різниця потенціалів називається трансмембранним, або мембранним потенціалом.
Якщо клітина перебуває в стані спокою, її мембранний потенціал має від'ємне значення і стійку величину. Зазвичай його називають мембранним потенціалом спокою. Мембранний потенціал спокою клітин різних тканин становить від - 55 мілівольтів (мВ) до -100 мВ.
За певних фізіологічних умов можуть відбуватися зміни мембранного потенціалу. Зміни його в додатному напрямку називаються деполяризацією плазматичної мембрани. Зміщення мембранного потенціалу у від'ємному напрямку називається гіперполяризацією.
Різницю потенціалів між внутрішнім і зовнішнім середовищами клітини можна виміряти безпосередньо й досить точно. Для цього використовують мікроелектрод, що являє собою скляну мікропіпетку з діаметром кінчика до 1мкм, заповнену концентрованим розчином KCl. Мікроелектрод підключають до підсилювача напруги реєструвального пристрою. Можна вимірювати мембранний потенціал м'язових, нервових клітин або клітин інших тканин. Інший електрод (референтний) встановлений на поверхні тканини.
Коли кінчик мікроелектрода перебуває поза клітиною, його потенціал відносно референтного електрода дорівнює нулю. Якщо кінець електрода занурюють у клітину, проколюючи плазматичну мембрану, різниця потенціалів різко стає від'ємною. На шкалі вимірювального пристрою реєструється різниця потенціалів між внутрішнім і зовнішнім середовищами клітини. Ця різниця потенціалів називається трансмембранним, або мембранним потенціалом.
Якщо клітина перебуває в стані спокою, її мембранний потенціал має від'ємне значення і стійку величину. Зазвичай його називають мембранним потенціалом спокою. Мембранний потенціал спокою клітин різних тканин становить від - 55 мілівольтів (мВ) до -100 мВ.
За певних фізіологічних умов можуть відбуватися зміни мембранного потенціалу. Зміни його в додатному напрямку називаються деполяризацією плазматичної мембрани. Зміщення мембранного потенціалу у від'ємному напрямку називається гіперполяризацією.
Біофізичні основи мембранного потенціалу спокою
Електричні явища в плазматичній мембрані визначаються розподілом іонів між внутрішнім і зовнішнім боками мембрани. Із хімічного аналізу відомо, що концентрація іонів внутрішньоклітинної рідини сильно відрізняється від концентрації іонів у позаклітинній рідині. Термін "позаклітинна рідина" стосується всіх рідин поза клітинами (міжклітинна речовина, кров, лімфа тощо). У таблиці подано концентрації основних іонів у м'язових клітинах ссавців і в позаклітинній рідині (мілімолі на літр).
Зображення
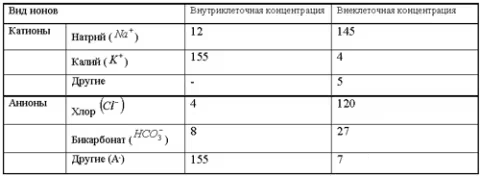
Існують значні відмінності між концентрацією основних іонів усередині клітини і поза нею. Позаклітинна рідина має високу концентрацію іонів натрію і хлору. Внутрішньоклітинна рідина має високу концентрацію калію і різних органічних аніонів (A-) (заряджені групи білків).
Різниця між концентраціями натрію і калію в позаклітинній і внутрішньоклітинній рідинах зумовлена діяльністю натрій-калієвого насоса, який за один цикл викачує з клітини 3 іони натрію і закачує в клітину 2 іони калію проти електрохімічного градієнта зазначених іонів. Основна функція натрій-калієвого насоса - підтримання різниці концентрацій іонів натрію і калію по обидва боки плазматичної мембрани.
У стані спокою проникність плазматичної мембрани для іонів калію значно перевищує проникність мембрани для іонів натрію. У нервових клітинах співвідношення проникності відповідних іонів становить 1:0,04.
Цей факт дає змогу пояснити існування мембранного потенціалу спокою.
Іони калію прагнуть покинути клітину через їхню високу внутрішню концентрацію. При цьому переміщення внутрішньоклітинних аніонів через мембрану через їхні великі розміри не відбувається. Незначне надходження іонів натрію всередину клітини також не компенсує виходу іонів калію назовні, оскільки проникність мембрани в спокої для іонів натрію мала.
Отже, зовні клітина набуває додаткового додатного заряду, а всередині залишається надлишок від'ємного заряду.
Дифузія калію через мембрану - процес обмежений. Іони калію, що проникають через мембрану, створюють електричне поле, яке затримує дифузію інших іонів калію. У міру виходу калію з клітини електричне поле наростає і, зрештою, напруженість досягає такого значення, коли потік калію через мембрану припиняється. Стан, при якому потік іонів за їхнім концентраційним градієнтом зрівноважується мембранним потенціалом, називається станом електрохімічної рівноваги іонів. Величина такого рівноважного мембранного потенціалу визначається рівнянням Нернста (при цьому вважають, що мембрана проникна лише для одного виду іонів):
Різниця між концентраціями натрію і калію в позаклітинній і внутрішньоклітинній рідинах зумовлена діяльністю натрій-калієвого насоса, який за один цикл викачує з клітини 3 іони натрію і закачує в клітину 2 іони калію проти електрохімічного градієнта зазначених іонів. Основна функція натрій-калієвого насоса - підтримання різниці концентрацій іонів натрію і калію по обидва боки плазматичної мембрани.
У стані спокою проникність плазматичної мембрани для іонів калію значно перевищує проникність мембрани для іонів натрію. У нервових клітинах співвідношення проникності відповідних іонів становить 1:0,04.
Цей факт дає змогу пояснити існування мембранного потенціалу спокою.
Іони калію прагнуть покинути клітину через їхню високу внутрішню концентрацію. При цьому переміщення внутрішньоклітинних аніонів через мембрану через їхні великі розміри не відбувається. Незначне надходження іонів натрію всередину клітини також не компенсує виходу іонів калію назовні, оскільки проникність мембрани в спокої для іонів натрію мала.
Отже, зовні клітина набуває додаткового додатного заряду, а всередині залишається надлишок від'ємного заряду.
Дифузія калію через мембрану - процес обмежений. Іони калію, що проникають через мембрану, створюють електричне поле, яке затримує дифузію інших іонів калію. У міру виходу калію з клітини електричне поле наростає і, зрештою, напруженість досягає такого значення, коли потік калію через мембрану припиняється. Стан, при якому потік іонів за їхнім концентраційним градієнтом зрівноважується мембранним потенціалом, називається станом електрохімічної рівноваги іонів. Величина такого рівноважного мембранного потенціалу визначається рівнянням Нернста (при цьому вважають, що мембрана проникна лише для одного виду іонів):
Зображення
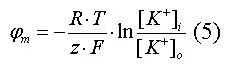
R - універсальна газова стала, T - термодинамічна температура, z - електричний заряд іона, F - стала Фарадея, [K+]i і [K+]o - внутрішньоклітинна і позаклітинна концентрації іонів калію відповідно.
Обчислення, засновані на рівнянні Нернста, вказують, що внутрішня і зовнішня концентрація іона хлору також відповідає стану електрохімічної рівноваги, але концентрація натрію далека від рівноваги з мембранним потенціалом мембрани.
Рівняння Нернста показує, що концентраційний градієнт іонів калію визначає величину мембранного потенціалу спокою лише в першому наближенні. Розраховані величини мембранного потенціалу збігаються з отриманими експериментально лише за високої концентрації калію поза клітиною.
Точнішу величину мембранного потенціалу спокою можна обчислити з рівняння Гольдмана-Ходжкіна, в якому враховуються концентрації та проникність мембрани для трьох основних іонів внутрішньо- і позаклітинної рідин:
Обчислення, засновані на рівнянні Нернста, вказують, що внутрішня і зовнішня концентрація іона хлору також відповідає стану електрохімічної рівноваги, але концентрація натрію далека від рівноваги з мембранним потенціалом мембрани.
Рівняння Нернста показує, що концентраційний градієнт іонів калію визначає величину мембранного потенціалу спокою лише в першому наближенні. Розраховані величини мембранного потенціалу збігаються з отриманими експериментально лише за високої концентрації калію поза клітиною.
Точнішу величину мембранного потенціалу спокою можна обчислити з рівняння Гольдмана-Ходжкіна, в якому враховуються концентрації та проникність мембрани для трьох основних іонів внутрішньо- і позаклітинної рідин:
Зображення
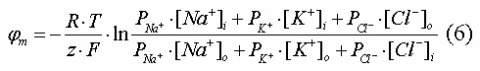
Також у підтриманні мембранного потенціалу спокою бере участь безпосередньо натрій-калієвий насос, викачуючи три іони натрію з клітини і закачуючи лише два іони калію. У результаті мембранний потенціал спокою стає більш від'ємним, ніж був би, якби створювався лише пасивним переміщенням іонів через мембрану.
Потенціал дії
Якщо через мембрану нервової або м'язової клітини проходить короткочасний електричний струм, то мембранний потенціал зазнає послідовних змін, які є специфічними й унікальними для збудливих клітин. Збудливі тканини можна стимулювати також механічними або хімічними засобами, але в експериментальній роботі, як правило, використовуються електричні стимули.
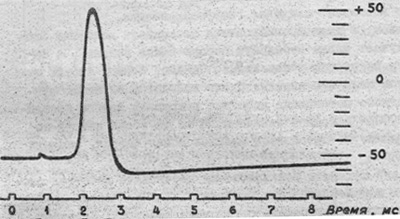 Рис. 1. Потенціал дії нервової клітини.
Потенціал дії - швидке коливання величини мембранного потенціалу, спричинене дією на збудливу клітину електричного або іншого подразника.
На рис. 1 показано потенціал дії нервової клітини, записаний за допомогою мікроелектрода. Якщо до клітини прикладають короткочасний електричний стимул, мембранний потенціал швидко зменшується до нуля. Це відхилення характеризують як фазу деполяризації. Протягом короткого часу внутрішнє середовище клітини стає електропозитивним відносно зовнішнього (фаза реверсії мембранного потенціалу, або овершут). Потім мембранний потенціал повертається до рівня мембранного потенціалу спокою (етап реполяризації) (рис.2.).
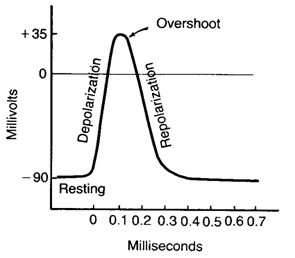 Рис. 2. Фази потенціалу дії
Тривалість потенціалу дії становить від 0,5 до 1 мілісекунди у великих нервових клітинах і кілька мілісекунд у клітинах скелетних м'язів. Загальна амплітуда - майже 100 - 120мВ, відхилення від нульової лінії - близько 30-50мВ.
Потенціал дії відіграє провідну роль в обробці інформації в нервовій системі. Він має сталу амплітуду, яка не є ймовірнісною величиною. Це має велике значення в обробці інформації нервовою системою. Кодування інтенсивності подразнення здійснюється числом потенціалів дії та частотою, з якою потенціали дії слідують один за одним.
Рис. 1. Потенціал дії нервової клітини.Потенціал дії - швидке коливання величини мембранного потенціалу, спричинене дією на збудливу клітину електричного або іншого подразника.
На рис. 1 показано потенціал дії нервової клітини, записаний за допомогою мікроелектрода. Якщо до клітини прикладають короткочасний електричний стимул, мембранний потенціал швидко зменшується до нуля. Це відхилення характеризують як фазу деполяризації. Протягом короткого часу внутрішнє середовище клітини стає електропозитивним відносно зовнішнього (фаза реверсії мембранного потенціалу, або овершут). Потім мембранний потенціал повертається до рівня мембранного потенціалу спокою (етап реполяризації) (рис.2.).
Рис. 2. Фази потенціалу діїТривалість потенціалу дії становить від 0,5 до 1 мілісекунди у великих нервових клітинах і кілька мілісекунд у клітинах скелетних м'язів. Загальна амплітуда - майже 100 - 120мВ, відхилення від нульової лінії - близько 30-50мВ.
Потенціал дії відіграє провідну роль в обробці інформації в нервовій системі. Він має сталу амплітуду, яка не є ймовірнісною величиною. Це має велике значення в обробці інформації нервовою системою. Кодування інтенсивності подразнення здійснюється числом потенціалів дії та частотою, з якою потенціали дії слідують один за одним.
Біофізичні основи потенціалу дії
Потенціал дії виникає внаслідок специфічних змін іонної проникності в плазматичній мембрані. Англійський фізіолог Ходжкін показав, що основний механізм потенціалу дії полягає в короткочасній і дуже специфічній зміні проникності мембрани для іонів натрію. Іони натрію при цьому надходять у клітину до моменту, поки мембранний потенціал не досягне потенціалу електрохімічної рівноваги іонів натрію.
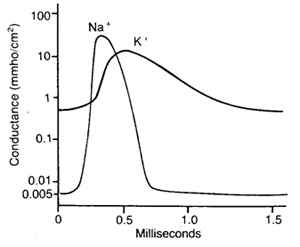 Рис. 3. Зміна проникності мембрани для іонів натрію і калію під час потенціалу дії
Проникність мембрани для натрію при дії на клітину електричного стимулу зростає приблизно в 500 разів і стає значно більшою, ніж проникність мембрани для іонів калію. У клітині різко підвищується концентрація іонів натрію. У результаті мембранний потенціал набуває додатного значення, і потік іонів натрію в клітину сповільнюється.
Під час виникнення потенціалу дії відбувається деполяризація плазматичної мембрани. Швидка деполяризація мембрани під дією електричного стимулу спричиняє збільшення її проникності для іонів натрію. Посилене надходження іонів натрію в клітину підсилює деполяризацію мембрани, що, у свою чергу, спричиняє подальше збільшення проникності мембрани для натрію і т.д.
Але величина мембранного потенціалу при деполяризації не досягає рівня потенціалу електрохімічної рівноваги іонів натрію. Причиною цього є зниження проникності мембрани для іонів натрію через інактивацію натрієвого трансмембранного переносу. Цей процес різко зменшує проникність мембрани для іонів натрію і зупиняє наплив натрію в клітину.
У цей момент відбувається збільшення проникності мембрани для іонів калію, що призводить до швидкого зниження величини мембранного потенціалу до рівня потенціалу спокою. Проникність мембрани для іонів калію також знижується до свого нормального значення. Таким чином, інактивація вхідного натрієвого струму і підвищення проникності мембрани для іонів калію (вихідний струм) обмежують тривалість потенціалу дії та призводять до реполяризації мембрани.
Таким чином, протягом потенціалу дії деяка кількість іонів натрію надходить у клітину. Але ця кількість досить невелика. Зміна концентрації іонів у великих нервових клітинах становить лише близько 1/300000 початкової величини.
Основний механізм змін проникності мембрани зумовлений подіями в натрієвих і калієвих каналах мембрани. Стан їхніх воріт керується величиною мембранного потенціалу. Натрієві канали мають два типи воріт. Одні з них, що називаються активаційними воротами, закриті в стані спокою і відкриваються при деполяризації мембрани. Надходження іонів натрію в клітину спричиняє відкриття дедалі більшого числа активаційних воріт. Другий тип воріт натрієвих каналів - інактиваційні - при посиленні деполяризації мембрани поступово закриваються, що зупиняє приплив натрію в клітину. Деполяризація мембрани також є причиною відкриття додаткового числа калієвих каналів, унаслідок чого збільшується проникність мембрани для іонів калію і відбувається реполяризація мембрани.
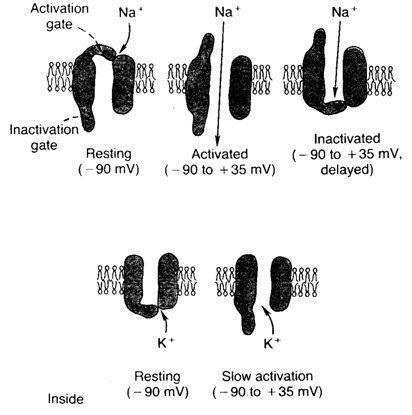 Рис. 4. Зміна стану натрієвих і калієвих каналів мембрани залежно від величини мембранного потенціалу
Рис. 3. Зміна проникності мембрани для іонів натрію і калію під час потенціалу діїПроникність мембрани для натрію при дії на клітину електричного стимулу зростає приблизно в 500 разів і стає значно більшою, ніж проникність мембрани для іонів калію. У клітині різко підвищується концентрація іонів натрію. У результаті мембранний потенціал набуває додатного значення, і потік іонів натрію в клітину сповільнюється.
Під час виникнення потенціалу дії відбувається деполяризація плазматичної мембрани. Швидка деполяризація мембрани під дією електричного стимулу спричиняє збільшення її проникності для іонів натрію. Посилене надходження іонів натрію в клітину підсилює деполяризацію мембрани, що, у свою чергу, спричиняє подальше збільшення проникності мембрани для натрію і т.д.
Але величина мембранного потенціалу при деполяризації не досягає рівня потенціалу електрохімічної рівноваги іонів натрію. Причиною цього є зниження проникності мембрани для іонів натрію через інактивацію натрієвого трансмембранного переносу. Цей процес різко зменшує проникність мембрани для іонів натрію і зупиняє наплив натрію в клітину.
У цей момент відбувається збільшення проникності мембрани для іонів калію, що призводить до швидкого зниження величини мембранного потенціалу до рівня потенціалу спокою. Проникність мембрани для іонів калію також знижується до свого нормального значення. Таким чином, інактивація вхідного натрієвого струму і підвищення проникності мембрани для іонів калію (вихідний струм) обмежують тривалість потенціалу дії та призводять до реполяризації мембрани.
Таким чином, протягом потенціалу дії деяка кількість іонів натрію надходить у клітину. Але ця кількість досить невелика. Зміна концентрації іонів у великих нервових клітинах становить лише близько 1/300000 початкової величини.
Основний механізм змін проникності мембрани зумовлений подіями в натрієвих і калієвих каналах мембрани. Стан їхніх воріт керується величиною мембранного потенціалу. Натрієві канали мають два типи воріт. Одні з них, що називаються активаційними воротами, закриті в стані спокою і відкриваються при деполяризації мембрани. Надходження іонів натрію в клітину спричиняє відкриття дедалі більшого числа активаційних воріт. Другий тип воріт натрієвих каналів - інактиваційні - при посиленні деполяризації мембрани поступово закриваються, що зупиняє приплив натрію в клітину. Деполяризація мембрани також є причиною відкриття додаткового числа калієвих каналів, унаслідок чого збільшується проникність мембрани для іонів калію і відбувається реполяризація мембрани.
Рис. 4. Зміна стану натрієвих і калієвих каналів мембрани залежно від величини мембранного потенціалуПоширення потенціалу дії
Потенціал дії поширюється вздовж мембрани нервової і м'язової клітин без зменшення амплітуди з відстанню. Цей процес зумовлений кабельними властивостями плазматичної мембрани, тобто здатністю проводити електричний струм на невеликі відстані. Локальний електричний струм тече в клітину в активній ділянці (де виникає потенціал дії) і з клітини - у суміжній неактивній зоні. Ці іонні струми спричиняють деякі зміни мембранного потенціалу в зоні, що прилягає до місця виникнення потенціалу дії.
Циклічний локальний струм знижує заряд мембрани в неактивній зоні й деполяризує її. Якщо деполяризація досягає порогового рівня, то зростає проникність мембрани для іонів натрію і виникає потенціал дії. Таким чином потенціал дії поширюється вздовж нервових і м'язових волокон зі сталою швидкістю.
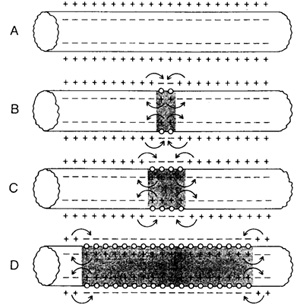 Рис. 5. Поширення потенціалу дії вздовж мембрани нервового волокна
Швидкість поширення потенціалу дії в нервових волокнах залежить від їхнього діаметра. Вона максимальна в найтовстіших волокнах і досягає близько 100 метрів за секунду.
Циклічний локальний струм знижує заряд мембрани в неактивній зоні й деполяризує її. Якщо деполяризація досягає порогового рівня, то зростає проникність мембрани для іонів натрію і виникає потенціал дії. Таким чином потенціал дії поширюється вздовж нервових і м'язових волокон зі сталою швидкістю.
Рис. 5. Поширення потенціалу дії вздовж мембрани нервового волокнаШвидкість поширення потенціалу дії в нервових волокнах залежить від їхнього діаметра. Вона максимальна в найтовстіших волокнах і досягає близько 100 метрів за секунду.